一个 丈夫数量~日期 的回归梗图:
- 注意回归的定义域
- 回归最擅长的不是外推(那是时间序列做的事),是做内差。
回归的故事
进化论:高尔顿钉板模型
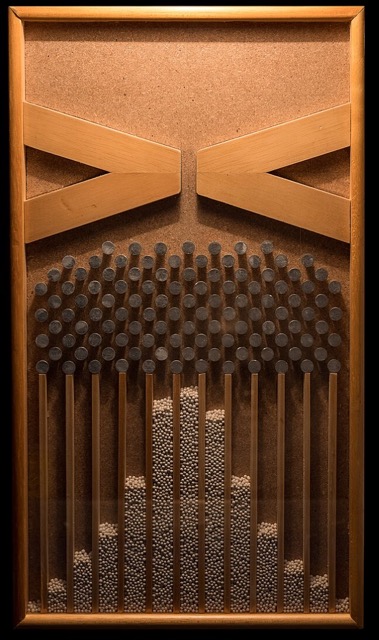
先讲讲小球为何呈现正态分布:
我们只考虑小球在水平方向的位置,小球落在第一层时,位置记为 0。
小球每下落一层,它可能向左移动,也可能向右移动,用 Ii 代表它从第 i 层到第 i+1 层发生的移动,Ii=1 表示向右,Ii=−1 表示向右。
容易发现,诸 Ii 独立同分布,且
P(Ii=1)P(Ii=−1)=0.5=0.5
设高尔顿板有 n 层,一个小球最终的位置可以用
S=i=1∑nIi
来表示。根据中心极限定理
Var(S)S−E[S]=nS→dN(0,1)
也就是说当 n 足够大时,S 近似服从 N(0,1).
高尔顿用这个模型来描述生物特征的代际遗传变异现象,每一层就是一代,但是很快我们能发现矛盾:随代数增长,方差越来越大,而种群特征分布应该是稳定的。
补丁:回归的发现
然后这哥们研究身高的遗传,看红色框里的数据:
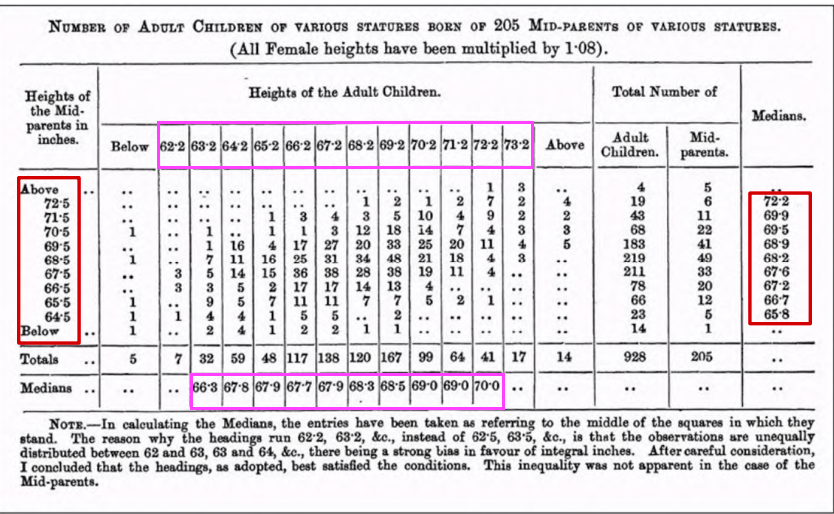
省流就是:高的父母生出来的也高,但没父母高;矮的父母生出来的也矮,但没父母矮。总之就是呈现一个“回归于庸常”的趋势。
弄反标签,还会回归吗?
- 跟周哥讨论过
- OLS 的目标不一样,一个水平,一个竖直
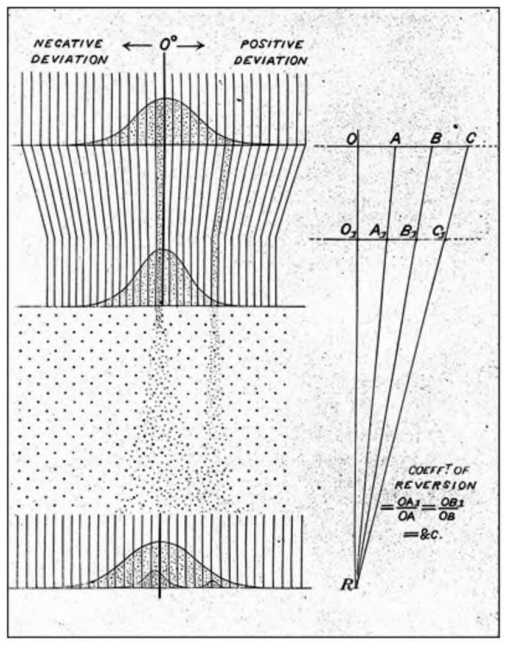
这可以用来对上面钉板模型打补丁:加一个向内缩的槽道,减小分布的方差
反过来看,也会出现回归现象:高的小孩,父母没那么高;矮的小孩,父母没那么矮(看上面图标紫色框里的数据)
兄弟之间看,也有一样的现象。
综上,回归是一种统计学现象。
对回归的解释
我们把一个生物特征的随机性分成两部分:种群的随机性和个体的随机性。前者体现在种群的每一个个体身上,后者是个体独有的。下面用这个框架解释回归现象:
F=G+V1S=G+V2
其中 F 指父辈身高,S 指子代身高,G 为种群决定的身高,Vi 为个体决定的身高。不妨假设 EG=p,EVi=0,并且 Vi 与 G 两两独立。
现在我们有一个身高比较高的父代个体 f=g+v1>p,我们来看看它的子代期望身高:
E[S∣G=g,V1=v1]=E[G+V2∣G=g,V1=v1]=g+E[V2∣G=g,V1=v1]=g
意思就是期望意义上,子代的身高跟父代由种群决定的那部分身高一样。
术语
Multiple regression 多重回归,然常称多元回归
回归的类型
- continuous∼∗
- quantitative∼quantitative
- quantitative∼quantitative+qualitative: analysis on covariance
- quantitative∼qualitative: ANOVA (analysis of variance)
- qualitative∼∗: logistic regression
- discrete∼∗: Poisson regression